
シジミタテハ科
From Wikipedia, the free encyclopedia
シジミタテハ科(シジミタテハか、学名:Riodinidae)はチョウの科のひとつ。

| シジミタテハ科 | |||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| | |||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||
| |||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||
| Riodinidae Grote, 1895 (1827)[1] | |||||||||||||||||||||||||||
| タイプ属 | |||||||||||||||||||||||||||
| Riodina Westwood, [1851][2] | |||||||||||||||||||||||||||
| 和名 | |||||||||||||||||||||||||||
| シジミタテハ科[3] | |||||||||||||||||||||||||||
| 英名 | |||||||||||||||||||||||||||
| metalmarks[4][5], metalmark butterflies[6] | |||||||||||||||||||||||||||
| 亜科 | |||||||||||||||||||||||||||
|
世界からおよそ 1500種が知られるが、その大半が新熱帯区に分布し、日本には分布しない。形態、生態ともに非常に多様であり、分類も混乱している。本科をシジミタテハ亜科としてシジミチョウ科に含める場合もあるが、本項では独立した科として扱う。
本科の和名である「シジミタテハ科」は、台湾に分布する Dodona eugenes[注釈 2]に対して三宅恒方が与えた和名「シジミタテハ」に由来する[8]。
分布と多様性
140属 1500種あまりが知られており[1]、種数のうえではチョウ全体の 8%程度を占める[5]。
汎熱帯的(英語: pantropical)な分布を示す科であるが[5][6]、そのほとんど(科全体の 90%以上)が新熱帯区に分布し[5][6][9]、旧世界からは 110種程度しか知られていない[5]。旧世界においては東洋区、オーストラリア区およびエチオピア区に複数種が分布し、旧北区からも数種が知られるが[5][9]、日本にはまったく分布しない[3]。シジミチョウ科とは分布のパターンが大きく異なるため、両科の起源と分散の過程は異なると考えられており[9][10][11]、近年の分子系統解析を取り入れた研究も本科の新熱帯区起源説を支持している[5]。
形態
成虫

本科の♂成虫の前脚は縮小し、歩行のためには用いられない[12][13].
本科の単系統性は次の三つの形態形質によって支持されると考えられている[14]。すなわち、オス成虫の前脚が縮小し、中・後脚の長さの半分以下になる[13][14][15][注釈 4]。メス成虫の前脚跗節の毛状感覚子(英語: trichoid sensilla)は対にならず、単一のクラスターを形成する[13][14][16]。メス交尾器の posterior apophyses が欠如する[3][14][16][注釈 5]。
本科の翅の形態や斑紋は非常に多様であることが知られており[3][5][6][16][17][18]、たとえば本科には、翅の表や裏に複雑であざやかな光沢をもつもの(Ancyluris 属など)、透明な部位(Chorinea 属など)や顕著な眼状紋を有するもの(Eurybia 属など)、他の鱗翅目の科と酷似し擬態関係にあると考えられるもの(後述。たとえば Chamaelimnas 属は Cyllopoda 属などの昼行性のガ類と擬態関係にある)、前翅前縁が前方に張り出すもの(Symmachia 属など)、後翅に長い一対の尾状突起(Rhetus 属など)や、複数の尾状突起を有するもの(Sarota 属など)など、さまざまな斑紋や翅形を示す種が属する[3][19]。このような外部形態の多様さは、後述するように、本科の分類にしばしば混乱をもたらしてきた[5][6][16]。
幼生期
本科の幼生期について分かっていることは少なく、卵や幼虫、蛹期の形態・生態が記録・報告されている種は 2004年時点で 200種に満たなかった[20]。近年は新知見の蓄積が進んでいるが、いまだ幼生期がまったく未知の種も多い[21]。
卵
卵はほとんど知られていないが、既知の種においては、下位分類群ごとに卵形態にある程度の差が見られる[16]。Styx 属、Corrachia 属、Hamearis 属、Euselasia 属の卵は樽型で、卵殻の隆起や彫刻は弱く、滑らかな表面をもつ。一方、Riodininae亜科の卵には、シジミチョウ科の卵に見られるような顕著な隆起線や彫刻が見られる[16]。Euselasia 属の中には、底部に短い卵柄状の構造を有しているものも報告されている[22]。
幼虫
既知の幼虫は形態的に多様であり、刺毛 が発達するものもしないものも知られる[3][14][23]。刺毛の発達の程度(刺毛の長さや密度)は、後述する好蟻性と関連し、アリと共生しない種では刺毛が発達する一方で好蟻性を示す種では刺毛が縮小する傾向が見られる[14][23][24][25]。中には前胸(英語: prothorax)に風船のように発達した刺毛(balloon setae)が密生したり(Theope 属など)[20][25]、装甲のように発達したクチクラで体が覆われたり(Pachythone 属など)[21][26]といった、特異な外観を示す分類群も知られる[20]。好蟻性の種は体表に特殊化した器官をもち、それらの位置や構造はシジミチョウ科の幼虫のものと異なる[27][28]。
蛹
生態
本科は生態的にも多様である一方、特に生活史についてはまったく未知である種もいまだ多い[5][20][21][29]。
本科の生態学的研究が進まない一因は、観察される機会が少ない種、すなわちいわゆる希少種が本科に多く含まれることにあるとされる[5][21][29][30]。このような希少性は時間的・空間的な分布の局所性、つまり限られた時期・場所・微環境においてのみ発生・生息・活動することに起因するとされる[16][31]。たとえば、Rhetus (syn. Nirodia) belphegor はブラジル、ミナスジェライス州のエスピニャソ山脈(ポルトガル語: Serra do Espinhaço)南部のごく限られた地点でのみ観察され、標高 1000m以上にある 'Campos rupestres' と呼ばれる環境に依存し、成虫は晴天時のもっとも気温が高くなる時間帯にしか活動しないことが知られている[32][33]。夜行性や薄明薄暮性が知られている種や[31]、林冠に生息し、地上にほとんど降りてこないと考えられる種も知られており[21][34][35]、中には新種記載以来ほとんど観察・採集例のないものも複数種知られている[19][32][35][36][37]。
本項では、成虫の擬態、幼虫の好蟻性(英語: myrmecophily)、幼虫と成虫の食性の三点についておもに概説する。
擬態


本科においては、さまざまな種の成虫が他種とベイツ型擬態および/あるいはミューラー型擬態関係を形成している可能性があることが知られている[3][16][29]。Methone 属、Ithomiola 属、Themone 属、Uraneis 属、Stalachtis 属など、新熱帯区に分布するすくなくとも 16の属が[36]、他の昼行性鱗翅類、すなわち、タテハチョウ科 Nymphalidae(特にドクチョウ亜科 Heliconiinae およびマダラチョウ亜科 Danainae の Ithomiini族)、ヒトリガ科 Arctiidae、シャチホコガ科 Notodontidae の Dioptinae亜科[36]、シャクガ科 Geometridae[34][35]などが形成する複数の擬態環に加わっている可能性があるほか[36][38]、シジミタテハ科の属どうしが擬態関係をもつと考えられる例や[3][29]、性的二形が見られる種において性特異的で複雑な擬態環が形成されている可能性などが議論されている[29]。形態が似通うだけでなく、静止姿勢や飛行パターンなど行動面における擬態の可能性が観察される場合もあり[3]、たとえば Chamaelimnas 属の種は、互いによく似る Cyllopoda 属(シャクガ科)などと同所的に見られることがあり[19][34]、飛翔中は両属を区別することが困難であるという[19]。また、幼虫期における擬態の可能性が議論されている種も知られている[29]。
いっぱんに、ベイツ型擬態の擬態種はモデル種と比べて生息密度が低い希少種である場合が多く[39][41]、本科のいくつかの種における希少性が擬態と関係している可能性も考えられるが[35]、いずれにせよ、本科における擬態の生態学的研究はほとんど進んでおらず、分かっていないことが多い[29]。
アリとの関係

Sy. calyce の幼虫は Camponotus 属のアリを誘引し、また、Banisteriopsis 属(キントラノオ科)の花芽をよく摂食する. この植物は花外蜜腺によってアリを誘引することで被食防衛を行っていると考えられており、Sy. calyce はアリと共生する一方、アリ-植物共生系に対しては有害に働いている可能性がある[42].
本科はアリと関係の深い分類群として知られており[16][21][25][43][44][45][46][47]、幼虫期に好蟻性、すなわちアリとなんらかの(広義の)共生的な関係を有することが知られている種[44]は、科全体のおよそ 20%にのぼる[21][45][48]。好蟻性種は新熱帯区に分布する Eurybiini族と Nymphidiini族の 2族からのみ知られており[28][29][47][48]、旧世界からは知られていない[16][24]。
本科の生活史は未解明の部分が多く、好蟻性にかんしてもシジミチョウ科と比べて分かっていることは少ない[16][25][49][50]。本科およびシジミチョウ科の好蟻性にかんしては、アリに栄養を提供する代わりに天敵から保護してもらうという相利共生的な関係が一般的であるとされる。このような相利共生的関係にかんしても寄主アリの選好やアリへの依存度は一様ではなく、おなじ属の中でも種によって大きく異なる場合がある[25]。近年はさらに、アリのコロニーに侵入してアリからの栄養の提供を一方的に受ける社会寄生性の種(Aricoris arenarum[47])や、アリの幼虫を捕食する可能性のある種(Pseudonymphidia agave[21])も報告されており[21]、好蟻性の進化を考えるうえでも、本科の生活史解明のためのさらなる研究の進展が必要とされている[21][25]。また、好蟻性が見られない種であってもアリからの攻撃を回避し、身を守るためのなんらかの適応が見られる場合が多く、共生的な関係を構築しないことは、アリとまったく関係しないことを意味しない。アリから身を守るための手段としては、化学的な防御(英語: chemical defense)や刺毛の発達が挙げられ[51]、特に刺毛にかんしては、好蟻性を示さない種において刺毛の長さと密度が高くなる傾向が見られる[14][23][24][25]。
本科の幼虫期における好蟻性は、アリの行動を変化させるための音響的または化学的な刺激を生成・媒介する、形態的に特殊化した好蟻性器官(myrmecophilous organ[注釈 7])によって構築・維持される[27][29][53][54]。本科の幼虫の好蟻性器官として以下のようなものが知られているが、好蟻性を示さない種にも見られるものや、機能が明確に分かっていないものもある[27][29]。幼虫の好蟻性器官の位置や構造はシジミチョウ科のものとは異なり、PCOs以外の両者の好蟻性器官が相同ではないことから、好蟻性は両科の祖先的な形質ではなく、それぞれの系統で独立して獲得されたものであると考えられている[47][48][55]。
- シジミタテハ科幼虫の好蟻性器官
- TNO (tentacle nectary organ)
- :第8腹節背面に対になって存在する。TNO からは糖やアミノ酸を含む液滴(蜜)が分泌され、栄養分をアリに提供する代わりにアリからの保護を受けるために機能する[27][28][29]。既知の好蟻性種のすべてで見られるほか[27]、Nymphidiini 族の好蟻性を示さない属においても存在が確認されているが[29]、これは二次的に蜜の分泌機能を失い、化学防御のために用いられるようになったものである可能性がある[29][47]。
- ATO (anterior tentacle organ)
- :第3胸節(後胸)に対になって存在する。揮発性有機化合物を分泌し、アリの行動を制御するための化学的刺激を媒介していると推測されているが[27][28]、幼虫が分泌する揮発性物質の分析は困難であるため詳しいことはよく分かっていない[56]。Nymphidiini 族の好蟻性種のみから知られており、Eurybiini族は ATOを有さないとされる[27][29]。
- vibratory papillae
このほかにもこれらとは異なる好蟻性器官や、アリとの共生のためになんらかの機能を有している可能性のある表皮構造がいくつか知られている[25][27]。前述の、前胸に密生する風船状の刺毛(balloon setae)も好蟻性器官としての機能を有している可能性が議論されているが、Helicopini族や Riodinini族などの好蟻性を示さない分類群においても見られるため、捕食回避のために機能している可能性はあるものの、好蟻性器官としての機能は現状疑問視されている[20][25]。
蛹期においても摩擦発音機構(英語: stridulatory organ)の存在が認められており、好蟻性との関連が疑われるが、こちらも好蟻性種だけでなく好蟻性を示さない種からも知られている[59]。成虫期においては、寄主アリを産卵の目印とする種(Minstrellus grandis[60])や、吸蜜中にアリからの攻撃を受けない種(Adelotypa annulifera[46])の報告がある[21]。
食性

本種を含む Eurybia 属は長い口吻をもつことが知られており、中には体長の2倍以上の長さの口吻を有する種(Eur. lycisca)も知られている. 本属の長い口吻は花からの吸蜜のための適応であると考えられる[61].
本科の幼虫の食草として、40以上の科の植物が記録されている[14][16]。シジミチョウ科とは異なり、本科の植食性種は基本的に食草の葉のみを摂食するものがほとんどであり、蕾や花、果実など葉以外の部位を摂食する種は多くないとされている[16][62]。食草範囲は分類群によって異なるが[63]、好蟻性を示す種は花外蜜腺をもつ植物を食草とする傾向が見られるため、本科の好蟻性種においては花外蜜腺から蜜を摂取する種が少なくないと考えられ[62]、実際に蜜食のみを行う種(Ad. annulifera)も報告されている[46]。また、生きた植物組織の摂食と蜜食以外にも、葉上に生育する地衣類を摂食するもの(Sarota 属[64][65])、枯れ葉を食べる腐植食者(英語: detritivory)(Detritivora 属[65])、半翅目を捕食するもの(Pachythone 属など[26])、半翅類の排泄する甘露を摂取したり、アリから口移しで給餌を受ける(英語: trophallactic)種(Ar. arenarum[47])や、アリの幼虫などを捕食する可能性のある種(Ps. agave[21])も報告されており、本科の幼虫食性は多様であると言える[21][46]。蜜食、半翅類の捕食、甘露の摂取やアリからの口移し給餌、アリ幼虫の捕食は好蟻性と密接に関係しており、食性は好蟻性の進化を考えるうえでも重要であるとされる[21][46][62]。
成虫は種によってさまざまな餌資源を利用することが知られている[66]。雌雄を問わず花から吸蜜するほか[66]、特にオス成虫は湿った砂や泥からの吸水(英語: puddling)や[67]、腐肉からの吸汁を行うことも知られている[66]。エクアドルで行われた、124種のオス成虫を対象にした調査 (HALL & WILLMOTT 2000) では、花からの吸蜜、湿った地面からの吸水、腐敗した魚からの吸汁の三タイプの摂食行動が観察された一方、タテハチョウ科などではよく見られる、腐った果実からの吸汁は観察されなかった。また、分類群ごとに利用する餌資源が異なる傾向が見られ、この傾向が成虫の飛行速度や代謝率と相関する可能性が示されている[66]。一方で、腐敗した果実[68]や花外蜜腺[46]から吸汁することが知られている種も報告されている[68]。
その他
本科においては幼虫齢数(英語: number of larval instars)が 5齢を超える種が珍しくなく[69]、たとえば Calephelis 属に属する Ca. muticum の終齢は 8齢[70]、Ca. borealis の終齢は 9齢[71]であるという[69]。
本科においては、幼虫期が既知のいくつかの下位分類群で集合性を示す種が知られている[72]。集合性を示す種は Emesis 属や Melanis 属[72]、Praetaxila 属、Abisara 属からも知られているが、特に Euselasiini族においては幼虫期が既知の種すべてで集合性が知られており[73]、Euselasia 属では集団が一列に並んでいっせいに移動する行列行動も報告されている[73][74]。
系統と分類

ペルー中南部、標高 1000-1600m の雲霧林に分布する[32]. 形態的に特異な種であり[5][13][15]、ガ類やシロチョウ科に分類されたこともある[5]. 本種のみを含む単型科 Stygidae や単型亜科 Styginae を設ける場合もあったが[75][76][77]、近年の系統分類体系(Espeland et al. 2015、SERAPHIM et al. 2018)では亜科 Nemeobiinae に含められる[5][6]。
前述したような外部形態や生態の多様さは、本科の分類にしばしば混乱をもたらしてきた[5][6][16]。
上位分類と系統的地位
本群の分類学史はリンネの『自然の体系(英語: Systema Naturae)』によって、いくつかの種、たとえば Papillio lucina や P. lysippus、P. calliope などが記載されたことにさかのぼることができる[78]。しかしながら、これらの種はひとつの分類群にまとめられることなく互いに異なるグループに含められ[注釈 8]、その後もアゲハチョウ類やシジミチョウ類、タテハチョウ類、テングチョウ類、セセリチョウ類と関連づけられたり含められたりする、混乱した状況が続いていた[80][17]。後述もするが、たとえば、Swainson (SWAINSON 1827) は 1827年、本群に初めて科としての学名 Erycinidae を与えたことで知られる。しかしながら、後の文献 (Swainson & Shuckard 1840) によれば、Erycinidae sensu Swainson にはシジミチョウ類が含められており[17][81]、さらに後にはテングチョウ類を含める場合もあった[80]。Westwood (WESTWOOD 1850-1852) はそれまでの本群の分類史を概括し、本科と他科との境界の明確化と下位分類の整理を行い、本科の近代的な分類のひとつの重要な基礎となったが、その後も新種記載は進み、分類体系の見直しは続いていくこととなる[80]。本科の現代的な分類につながる先駆的な文献として Stichel による目録が知られているが[3][6][18]、こちらは後述する。
本科とシジミチョウ科の近縁性は古くから指摘されており、たとえば前述の Westwoodや Stichel も本科とシジミチョウ科が近縁である可能性を指摘している[80][17]。そのため本科はシジミチョウ科の姉妹群と見なされ、シジミチョウ科群を構成するふたつの科のうちのひとつとして扱う分類体系が長らく一般的であった[5][75][76]。しかしながら、20世紀後半には、シジミチョウ科の亜科のうちふたつを科に格上げすることで科群に 4科を含める CLENCH (1955) や、科群を科に格下げし、シジミチョウ科の亜科としてシジミタテハ亜科を認める EHRLICH (1958) のような分類体系が提唱され[75][76]、また一方で、Robbins (1988a) は本科とシジミチョウ科の系統的近縁性を否定し、本科がむしろタテハチョウ科と近縁である可能性を示すなど[82]、本科の系統的位置づけはかならずしも安定しているわけではなかった[79]。特に本科をシジミチョウ科に亜科として含めるかどうかについては議論が多く[77][83]、New (1993) や Pierce et al. (2002) のようにシジミチョウ科の下位にシジミタテハ亜科を含めて解説する文献も多い。近年の分子系統学的研究は本科とシジミチョウ科が姉妹群を形成することをつよく支持しており、両単系統群をそれぞれ独立した科として認める系統分類体系がよく採用されている[5][6][48]。
| 文献 | Swainson & Shuckard (1840) | DOUBLEDAY & WESTWOOD (1846-1852) | BATES (1862) | CLENCH (1955) | EHRLICH (1958) | |
|---|---|---|---|---|---|---|
|
|
|
|
|
|
| 文献 | EHRLICH (1958) | Robbins (1988a) | DE JONG, VANE-WRIGHT & ACKERY (1996) | Espeland et al. (2018) | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
|
|
|
|
下位分類と内部系統
| SERAPHIM et al. (2018) による本科の系統仮説 | |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ベイズ法によって得られた分子系統樹. 族 Dianesiini は系統的位置が不安定であるため、本系統樹には含まれていない[6]. |
本科はいくつかの亜科に分けられるが、亜科の数や含まれる下位分類群(ここでは族、亜族、および属)については議論が多く、安定していない[5][6]。
本科の亜科分類には、おおまかに分けてふたつの亜科を認めるもの、3亜科を認めるもの、5亜科を認めるものの三種類の分類体系がある[6]。Stichel によって提唱された分類体系(たとえば Stichel 1910–1911、Stichel 1928)は本科を Nemeobiinae と Riodininae の 2亜科に分けるもので、かつては広く用いられていた[3][6][18]。Harvey は本科を次の 5亜科、すなわち、Styginae、Nemeobiinae、Euselasiinae、Corrachiinae、Riodininae に分ける高次分類体系を提唱したが、このうち Styginae と Corrachiinae は後の文献(HALL & HARVEY 2002b、Callaghan & Lamas 2004)において亜科 Euselasiinae の下位分類群へと格下げされ、その後しばらくは本科を次の3亜科、すなわち旧世界に分布する Nemeobiinae、新熱帯区に分布する 5属を含む Euselasiinae、残りすべての種を含む Riodininae に分ける分類体系が一般的になっていた[5]。ここまで紹介した分類体系は、形態形質にもとづいて推定された系統関係を反映したものだが、2000年代ごろからは本科を対象にした分子系統解析が行われ始めた。Espeland et al. (2015) は、一部を除いてそれまでほとんど研究が行われていなかった旧世界の種を含む本科の系統解析を行い、本科の起源と分岐年代、系統史にかんしての考察を行い[5][6]、また、本科に含まれる属のおよそ 80%を含む系統樹を作成した SERAPHIM et al. (2018) は、いくつかの新たな下位分類群の記載と分類の整理ともに、本科を Nemeobiinae と Riodininae の 2亜科に分ける体系を提唱している[6]。これらふたつの研究は本科の大規模で包括的な系統学的研究であると評価されており[18]、後者の SERAPHIM et al. (2018) による本科の高次分類体系は、生態にかんする最近の研究(たとえば NIELSEN & KAMINSKI 2018 や Pérez-Lachaud et al. 2021)や目録 (Garwood et al. 2021) においても採用され始めている[21][29][85][注釈 11]。
| 文献 | Stichel (1930-1931)[注釈 12] | Harvey (1987) | Callaghan & Lamas (2004) | Espeland et al. (2015) | SERAPHIM et al. (2018) |
|---|---|---|---|---|---|
|
|
|
|
|
|
命名法上の問題
本科の学名にかんしては命名法上の問題があったことが知られている[2][4][8]。本科の学名として現在用いられているのは、Grote によって 1895年に公表された Riodinidae であるが[1][4]、かつてはこの学名のほかに Erycinidae、Nemeobiidae、Lemoniidae といった学名を用いる場合があった[8]。このうち公表年がもっとも古いのは Erycinidae Swainson, 1827 であり、通常は先取権の原理によってこの学名が有効名 (英語: valid name) となる。しかしながら、Erycinidae のタイプ属の学名である Erycina Fabricius, 1807 は Erycina Lamarck, 1805(軟体動物の一属)の新参同名であり[4][8]、このような場合、命名規約条39[89]にもとづき Erycinidae は無効名 (英語: invalid name) となる。また、Erycina Fabricius, 1807 のタイプ種は Papilio lysippus Linnaeus, 1758 であるが、この名義種は、前述した Westwood が 1851年に設立した属 Riodina Westwood, 1851 のタイプ種に指定されており[2]、これは置換名(英語: replacement name) の提唱と見なすことができる[2][4]。以上のような命名法上の問題は古くから認識されていたが[8][80]、実際に動物命名法国際審議会(ICZN)に裁定が求められたのは1972年、C.F. Cowan による訴えが最初であり[2]、その後、1977年には裁定 (ICZN Opinion 1073) が下され、Riodina をタイプとする学名である Riodinidae に優先権が与えられ、有効名となることが決定された。Erycinidae は ICZN の無効名目録に掲載されることになったが、Erycinidae の公表年は、命名規約条40[90]にもとづき、Riodinidaeの公表年の後ろに丸括弧つきで併記されることとなった。したがって、本科の学名を、著者と公表の日付を伴って正式に引用する場合は Riodinidae Grote, 1895 (1827) となる[2][4]。
人との関係

本科にかんする研究は著しく遅れており、チョウの中ではもっとも研究が進んでいない分類群とされている[6][16][20]。
経済的影響によって注目される種はほとんどいない[29][31]。フトモモ科などを食草とする Euselasia 属には、農業などへの影響の観点から注目される種もいくつか知られており、Eus. eucerus は、南米では移入種であるユーカリの葉を好んで摂食し、栽培ユーカリにかんする経済的に重要な害虫として報告されている[31]。一方、Eus. chrysippe および Eus. bettina はオオバノボタンを摂食することから、ハワイなどで侵略的外来種となっているオオバノボタンにかんする生物的防除資材として利用できる可能性があるという[68]。
前述したように本科の分布・発生は時間的・空間的な局所性がつよい傾向があり、環境の変化に脆弱で人間活動の影響を受けやすいと考えられるため、効果的な保全のためにも生活史にかんする研究は重要視されている[30]。いくつかの種は具体的な保全活動の対象となっており[32]、とくに前述した Rh. belphegor はIUCN のレッドリストにおいて絶滅危惧種(EN: Endangered)に指定されており、ブラジルにおける保全プロジェクトの援助を得て近年はじめて生活史が解明された[33]。一方、同様に IUCNレッドリストにおいて EN に指定されている[32]Joiceya praeclarus は、2011年に再発見されるまでの80年以上ものあいだ 2頭のタイプ標本でしか知られていなかった。再発見された産地とtype locality との間には 1000km 以上の距離があることもあり、本種のレッドリストカテゴリは情報不足(DD: Data deficient)が適切であるとの指摘がなされている[37]。
ギャラリー


 Napaea heteroea, エクアドル
 Leucochimona icare, ブラジル
 Semomesia marisa, ブラジル
 Nymphidium caricae, ペルー
 Lemonias zygia, ブラジル
 Echydna punctata, ペルー
 Argyrogrammana nurtia ♀ 展翅標本腹側, ペルー
 Anteros principalis, ペルー
 Helicopis cupido, ペルー

 Caria mantinea, パナマ
 Lasaia agesilas, ブラジル
 Detritivora barnesi, パナマ
 Riodina lysippus, エクアドル
 Rhetus arcius, ブラジル
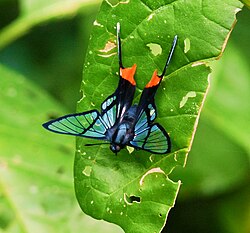 Chorinea octauius, 仏領ギアナ


