第四紀の大量絶滅
From Wikipedia, the free encyclopedia
第四紀の大量絶滅 は、新生代第四紀に起こった古生物や植物とくに大型の動物相「メガファウナ」の大量絶滅であるが[1][2][3][4]、厳密にはより小型の動物や植物においても絶滅が発生してきた[5]。本項においては後期更新世を中心とする中期更新世(チバニアン)の後期から中期完新世までの同時多発的な絶滅を中心に解説する。
第四紀の中では完新世、すなわち1万年前から現在の期間においてもホモ・サピエンスの環境破壊による大量絶滅が進行中であり、地球上の生物の少なくとも50%以上の生物種が絶滅する見込みであるが、これについては本項での記述の対象とせず、現在進行形の大量絶滅に関しては生物多様性#生物多様性への脅威を参照。
影響

中期更新世(チバニアン)の後期以降に集中して絶滅を迎えた動物相はこれらの複数の氷期と間氷期のサイクルを乗り越えてきたにも関わらず、突然にこの時期に人類の拡散に付随する形で各地域で絶滅している[6][7][8][9][10]。
第四紀の大量絶滅は、中期更新世(チバニアン)の後期から発生し始め、後期更新世の後半、おおむね最終氷期とその終了後(約7万年前-9千年前)に中心的に起こった。主に絶滅の対象となったのは「メガファウナ」と呼ばれる大型動物相(哺乳類・爬虫類・鳥類)であるが、中型や小型の生物や植生といった在来生態系が全体的に大きな影響を受けてきた[11]。これ以前にも地球上の大量絶滅は何度か発生してきたが、気候変動が主因となる大量絶滅においては小型動物も多大な影響を受けるのに対して、今回の特徴としては小型・中型の動物や植物にも顕著に絶滅が発生してきたものの[5]、絶滅の深刻度の割合が大型動物に辺倒していることが挙げられる[6]。
この大量絶滅において絶滅した生物相は数多く、内訳は最低でも150属(種数不明)の哺乳類、15属(種数不明)の大型のカメ、2000種以上の鳥類、その他多数の爬虫類や両生類や魚類、植物などが含まれている[12][5]。明確に人類の影響で絶滅したと考えられている種類も多岐に渡り、紀元前5万2000年前から9000年前の間の期間に限定しても、人為的な原因に直面して絶滅したメガファウナ(体重44 - 45キログラム以上)は合計178種またはそれ以上であり[6]、この数字には前後の時代の絶滅種やより小型の絶滅した生物相を含んでいない。地球上の陸棲メガファウナの80%以上(オーストラリア大陸では喪失率は88%に達した)が消え去ったとされており[13]、(大型の個体の事例ではなく)標準体重が1トンを超える種類はアフリカ大陸とユーラシア大陸の南部以外では全滅している[2][3]。
現在(21世紀)の時点で、人類に匹敵またはそれ以上の大きさを持つ大型陸棲動物のほとんどはアフリカ大陸やユーラシア大陸の南方に多く、それ以外のたとえばヨーロッパや(日本列島を含む)アジアの中・高緯度地域、北米大陸や南アメリカ大陸、オセアニアやマダガスカルなどでは現生の大型陸棲動物は少なく[3]、大量絶滅も南北アメリカ大陸やオーストラリアを筆頭に世界規模で発生していた[2][11]。対照的に、海洋生物ではこの様な大量絶滅はこの時期には発生してこなかった。

多くの場合は、生態系の一部が機能不全を起こすことで、動物だけでなく植物をも巻き込んだ全体的な生態系の衰退に繋がる共絶滅であり[14]、この大量絶滅もメガファウナに限定されているわけでなく、マクロファウナなどの他の動物相や植生においても絶滅、地域絶滅、分布の縮小などの衰退が見られた[11]。この大量絶滅の主要な原因には、人類による狩猟圧や生息環境の破壊などの悪影響、または気候変動による植生と生息環境の変化などが指摘されており、近年では(複数の要因が複合的に作用した種類に関しても)人類の影響[15]がより大きかった、つまり「気候変動などによって個体数や分布が減少した種類に関しても、人類との接触がなければ絶滅せずに気候変動を生き延びていた可能性がある」と見なされる場合が目立つ[6][7][8][9][10]。
大型動物はとくに生態系エンジニア[16]やキーストーン種[17][18]や種子の散布者(英語版)[19]としての重要なニッチを占めてきたことからも、在来生態系から構成員となる動物相が大量に欠損してきたことによる悪影響は現在も発生し続けており、小型動物や爬虫類や鳥類や昆虫などに留まらず、魚類などの水生生物も含めた全体的な動物相や、植生の生息や多様性も制限されて生態系の構成自体が変化した[6][12][14]。また、マンモス・ステップの動物相(マンモス動物群)を中心とした生態系の崩壊によって、動物だけでなく植生の生息や多様性も影響を受け、中には絶滅した植物も存在する[5]。
人類による野生動物の狩猟においては、大型動物が率先して狩りの対象と見なされてきた[12]。大型の動物は発見や追跡の難易度の低さ・動きの遅さ・標的の大きさなどの面から狙われやすいだけでなく、繁殖や成長の速度も遅く、必要とする餌や生息地がより大規模であったために人為的な個体数の減少と生息環境の悪化による悪影響がより深刻になる傾向が見られる。また、仮に過剰殺戮(オーバーキル)でなく、種(たとえばケブカサイ)によっては全世代の個体数の10%程度しか捕獲されていなかったとしても、個体群の分断や生息域の減少などを引き起こすには十分だったと考えられている[6][20]。
結果的にリンなどの栄養素の循環の阻害と減少[21]、土壌の悪化[12]、山火事の頻度の上昇、二酸化炭素やメタンの増加[22][23]、気温の変動などの副次的な被害も誘発されてきた[1][24][25]。また、現在の生態系は本来の状態を把握することが困難なほどに変貌を遂げており[6]、既存の群集生態学の知見にもこの大量絶滅のコンセプトとその影響の認識が欠落してきた可能性もある[26]。
頂点捕食者などの肉食動物の場合は、直接の食用の狩猟の対象となる場合の他にも、人間や家畜の安全のための駆除、人類および人類に由来する家畜との競合による生息地の喪失、草食動物の衰退による最終的な共絶滅を辿ることも少なくない[11][12][14][27]。なお、頂点捕食者の減少による草食動物の増加による弊害がクローズアップされることが目立つが[12]、頂点捕食者の再導入が必ずしも好転的な効果をもたらすわけではなく、また土着の頂点捕食者がそもそも存在しない環境も存在していたり、頂点捕食者や人為的な間引きが存在しなくても草食動物などの個体数が自然にコントロールされる事例も判明している(参照)。
近年は、とくに英語圏などのヨーロッパ語圏やロシア語圏では、これらの絶滅動物のニッチを直接的または間接的に補充する代用となる動物の野生導入および再野生化の一環である「更新世再野生化」の議論が盛んである[22][23]。国家プロジェクトや法的に認可された事例も複数が存在しており、中には土着の絶滅動物に近縁でない外来種においても、在来生態系へのポジティブな影響を考慮して駆除ではなく保護を訴える声も見られるようになってきている[28][29][30]。
 過去13万2千年における体重が10キログラム以上の陸棲動物の絶滅の分布図。
 ポール・シュルツ・マーティンによって提唱された、メガファウナに種子散布などを依存していたがパートナーとなるメガファウナが絶滅している北米原産の果実(通称「進化の亡霊」)の例[4]。
アボカドも著名な例である[31]。


影響を受けた生物相


ゾウ目ではデイノテリウム科・マストドン科・ステゴドン科・ゴンフォテリウム科が全滅し[37]、最後に残ったゾウ科もケナガマンモスやコロンビアマンモスなどの最後のマンモス属が滅び[38]、アフリカゾウ、アジアゾウ、マルミミゾウのわずか3種のみが生き残ったが、シリアゾウやジャワゾウやチュウゴクゾウが絶滅したなど、現生種の分布と多様性も大きく減少した。
北米大陸と南米大陸で繁栄した異節上目も、現生のナマケモノやアルマジロよりも遥かに大型である、メガテリウムやグロッソテリウムなどの地上性ナマケモノやグリプトドンやドエディクルスなどが全滅した[39]。
北米大陸はラクダ科・ウマ科・バク科の故郷でもあるが、これらの全てが北米大陸から消え去り、北米大陸・ユーラシア大陸問わずラクダ亜目[注釈 1]、ウマ目のジャイアントホースやジャイアントケープシマウマや南米最後のウマであったヒッピディオン[41]やEquus namadicus[42]、バク科のカリフォルニアバクやジャイアントバクなど、大型種や中型種を筆頭に絶滅が相次いだ。
なお、北米大陸はサイの故郷の可能性があるが、テレオケラスやアフェロプスなどを最後に、はるか以前の鮮新世に消え去っている[18][43][44]。しかし、サイもまた後期更新世や完新世に大きく種や分布を減らしており、エラスモテリウム、ケブカサイ[20]、日本列島にも分布していたニッポンサイと同一種であるメルクサイ[45]、ステップサイなどが絶滅し、中国の広範囲などにいたサイ科も姿を消している[18][46]。
鯨偶蹄目のステップバイソンやジャイアントバイソン、ジャイアントムースやスタッグムースやギガンテウスオオツノジカ[10]、ミオトラグスなど大型や中型の草食獣も数多く絶滅した。バイソン属も故郷のアジアでは絶滅し、アメリカバイソンとヨーロッパバイソンが北米大陸と大陸側のヨーロッパで生存した。
オセアニアで繁栄した有袋類も、ディプロトドン、ファスコロヌス、パロルケステス、プロコプトドンなどの多くの大型種や中型種などが絶滅した[11][47]。現生の肉食性有袋類ではタスマニアデビルが最大であるが、過去にはティラコレオ[注釈 2]、フクロオオカミ、プロプレオプスなどのより大型の部類が存在した[48]。また、北米大陸や南米大陸に生き残っていたマクラウケニアやXenorhinotherium、トクソドンやミクソトクソドンなどが絶滅したため、滑距目や南蹄目などが消滅した[49]。
カバではゴルゴプスカバやアンティクースカバやベヒモスカバやヘクサプロトドン[42]やマダガスカルのカバなど大型種から小型種まで多数が絶滅した結果、現在ではカバ科の分布はアフリカ大陸に限定されている。
齧歯目ではこの大量絶滅を機に大型種の上限がカピバラまで低下している。ジャイアントビーバーが人類に狩猟の対象とされていた証拠は存在しないが、トロゴンテリウムやNeochoerus pinckneyi(ピンクニーカピバラ)などがこの時期におそらく人類の影響によって絶滅している。
食肉目もダイアウルフ、更新世の大型オオカミ、プロトキオン、ホラアナハイエナ、ホラアナグマ、アルクトドゥスやアルクトテリウム(ショートフェースベア)、ホラアナライオン、スミロドン、ホモテリウム、ヨーロッパジャガー、ホラアナヒョウ、ジャイアントチーター、アメリカチーター、サルデーニャのオオカワウソ、ジャイアントフォッサなどの現生種よりも大型の肉食獣を中心に多数が絶滅した[11][12][27]。
霊長類では、アルケオインドリスやメガラダピスなどのマダガスカル島の固有種の多くが絶滅を迎え、ギガントピテクスなどの絶滅によってユーラシア大陸でも分布と多様性の激減を経ており、ヨーロッパで唯一の現生の野生のサルはジブラルタルのバーバリーマカク(英語版)のみとなっている。ヒト属についても、クロマニョン人などのサピエンスが急速に全世界に拡散し、ホモ・エレクトスやネアンデルタール人などの化石人類が駆逐され絶滅した[33]。なお、北米大陸では人類以外の土着の霊長類は漸新世以降に気候変動などによって滅んでいる[50]。
爬虫類でも15属(種数不明)の大型種[12]を筆頭とした中・小型種を含む多様なカメ類[注釈 3]、日本列島に分布したマチカネワニに近縁なハンユスクスやヴォアイなどのワニ、ウォナンビなどのヘビ[54]、メガラニア[55]やティモールのオオトカゲなどのトカゲが絶滅し[56]、コモドドラゴンも故郷であるオーストラリア大陸から消失している[57]。
鳥類ではモア[58]、エピオルニス、インド亜大陸のダチョウ[42]、東アジアのダチョウ(英語版)、ゲニオルニス[59][60]、Sylviornis[51]、ドードー[61]、テラトルニスコンドル[62]、ハーストイーグル、フォルスラコス科などの恐鳥類[63]、オルニメガロニクス[64]など大型種から小型種まで多数が絶滅した。
日本列島


後期更新世の日本列島でもとくに旧石器時代以降に多くの動物が急速な絶滅を迎えている(英語版)。日本列島は氷河期と間氷期のサイクルの中でユーラシア大陸との間に陸橋が何度か形成されており、それらに付随して陸棲動物の渡来も行われてきた。朝鮮半島(朝鮮陸橋)やより南部の中国大陸やサハリンを経由しており、時代ごとに「南方系」や「北方系(マンモス動物群)」の異なる動物相の流入が見られた[66]。
日本列島では古生物の資料が環境的要因[注釈 4]の影響で保存されにくいこともあり、後期更新世の動物相の原因について研究と議論は進んでおらず、主に「気候変動説」と「人類原因説」と「人類と気候変動の相互作用説」が唱えられてきた[67]。また、日本の環境考古学においては、「日本列島では人類は自然環境と調和してきた」や「ゆえに持続可能性に長けている」という「エコ・ネイティヴィズム(英語版)」的な論調が(資料の意図的な選択などの手段によって)形成され、さらに「エコ・ナショナリズム」に増長されてきた経歴があり、旧石器時代や古墳時代なども含めた人類による自然環境(および生態系)への影響が軽視されやすい歴史的な土壌が存在してきた[68]。
中期更新世(チバニアン)の末期や後期更新世(あるいは完新世)に日本列島に分布していた現在は見られない動物相の多様性は多岐に渡り、ナウマンゾウ、ケナガマンモス、ステップバイソン等のバイソン属[注釈 5]、オーロックス、スイギュウ[72]、サイガ[73]、ゴーラル属または大型のカモシカ属[注釈 6]、ヘラジカ、ヤベオオツノジカ、アカシカまたはワピチ[注釈 7]、トナカイなどの中・小型のシカ類[注釈 8]、モウコノウマを含むウマ科[78][79][80]、ライデッカーイノシシの系譜[69]、佐渡島のイノシシ[81]、本州以南のヒグマ、更新世の大型オオカミ[82]、タイリクオオカミ[83]、ドール属(アカオオカミ)[83]、トラ、ホラアナライオン(ヨウシトラ)[67]、ヒョウ、オオヤマネコ、ベンガルヤマネコ[84]、オオヤマリクガメ(ムツアシガメ属)[85]や他のカメ類[注釈 9]、ステラーカイギュウ、ヒレナガゴンドウ[89]などが後期更新世前後以降に姿を消している[69]。
また、「ニッポンサイ」ことメルクサイの日本列島における分布年代は、既知の範囲では中期更新世(チバニアン)に限定されているが[45]、標本の年代次第では後期更新世まで生存していた可能性も否定できないと指摘されている[90]。また、メルクサイ以外のステファノリヌス属属が日本列島に生息していた可能性もあるが[91]、ケブカサイが日本列島に到達していた可能性の有無に関しては資料不足のために断定が難しいとされる[90]。
なお、ここにはこれら以外の(日本列島に人類が大規模に渡来する以前の)前・中期更新世(チバニアン)まで日本列島に見られた動物相は含んでいない。また、各地のイノシシ、ニホンカワウソおよびエゾカワウソ、ニホンアシカ、ニホンオオカミおよびエゾオオカミ、九州のツキノワグマ、チョウザメ[注釈 10]などの有史以降に絶滅してきた動物相や、現在は自然由来または人為的に復活しているが土着の個体群が一度は消滅した種類(ラッコ、トキ、コウノトリなど)も含んでいない。また、たとえばセイウチのように、日本列島が現在の通常の生息環境や分布とは大きく異なる現生の海洋動物も除外している[92]。なお、コロブス(オナガザル科)については神奈川県産の化石が後期更新世に該当するとする資料も存在するが[93]、実際の年代は鮮新世であると考えられる[88]。
- 前・中期更新世までの日本列島に分布していた動物相としては、ステゴドン(アケボノゾウ、トウヨウゾウ・ハチオウジゾウ)、ナルバダゾウ、トロゴンテリーゾウ(シガゾウ)、ニッポンサイまたはメルクサイ[45][90]、(ネソリヌス属またはインドサイ属である)シナサイ[94]、Bibos亜属、エウクラドケロス[95]、シフゾウ属(シカマシフゾウやマヤシフゾウなど)、サンバー属(サンバー、キュウシュウルサジカ)、アクシスジカ、ジャコウジカ、キバノロ[96]、ハリネズミ属[96]、ハムスター[97][98]、レミング[98]、トガリネズミ科[99]、タナカグマ[91]、ファルコナーオオカミ[83]、ライオン[83]、オオアタマガメ科[88]、マチカネワニなどが存在する[69][97]。
関連画像

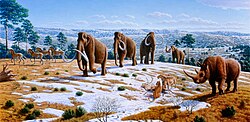
 後期更新世のチリの大型動物相の一部。
 後期更新世のブラジルの大型動物相の一部。
 オーストラリアの大型動物相の代表的な種であるディプロトドン。



原因


第四紀の大量絶滅が起こった原因については、全世界に広がったサピエンスの乱獲や道具として持ち込まれた「火」や生息域を巡る人類との競合などにより滅ぼされたとする「人類原因説」と、氷期と間氷期を繰り返した更新世の急速な気候変動により滅びたとする「気候変動説」が対立しており、現在もにぎやかに議論が続いている。どちらの説も、絶滅の時期や動物相と一致しない部分があり、十分な説得力を持てていない。
しかし、近年では(野生動物と人類との接触の期間がより長く野生動物が人類に対する知識を持っていた[11])アフリカ大陸やユーラシア大陸の南部に現生の陸棲のメガファウナの大半が生き残っていることや[2]、人類の各大陸や島々[51] への到達の時期と該当地域における大量絶滅などの時期の付随性などが目立ったり[12]、幾度かの気候変動を乗り越えてきた数々の種類が後期更新世や完新世で急に絶滅しているなど気候変動だけでは説明できない事例も目立つことから[7][8][100]、最終氷期に伴う気候と植生の変動によって生息数や分布が減少する事例も存在したものの、最終的な絶滅の決定打としては人類による影響が最も重大な影響を及ぼしたとする言説を支持する声が増加しており、種類によっては「人類原因説」と「気候変動説」などが多角的に作用したともされている[6][9][10][101]。
上記の通り、メガファウナは人類からの狩猟圧と生息地や餌の減少などの影響をとくに強く受けやすく、中・小型の生物相よりも個体数の激減、絶滅、地域絶滅に追い込まれやすい傾向にある。また、石器や槍などの技術的進歩と共に狩猟の効率化と成功率が底上げされ、人類がアフリカ大陸およびユーラシア大陸南部にいた頃よりも南北アメリカ大陸などの他の地域に到達した時代にはメガファウナの絶滅がより迅速・大規模に発生してきた可能性があり、とくに北米大陸などでの大量絶滅は「電撃戦」とも形容される[102]。また、人類と共に到来した(ディンゴも含む)家畜のイヌや、畜産動物との競合、家畜に由来する伝染病[103]もこれを後押ししたと考えられる[2][47]。
疑似科学では、オーストリア人アレクサンダー・トールマンの「超古代彗星衝突説」がある。彼の主張によれば、9,500年前に地球に氷彗星が衝突した。この際の大津波により、聖書の記述どおりノアの洪水が起き、プラトンの記述どおりアトランティス大陸が沈み、その他世界各地の神話どおりの大災害を起こして回ったという。さらに舞い上がった塵により寒冷期が訪れ、マンモスなどの大量絶滅が起こったという。この説は、欧米の創造論者や超古代文明信奉者に一定の支持を得ている。
なお、定向進化説においては、「コロンビアマンモスなどの長すぎる象牙」「ジャイアントバイソンの体と角の大きさ」「ギガンテウスオオツノジカの大きすぎる角」などを取り上げ、これらの動物は大きすぎる牙や角のせいで最終的に滅びたと説明される場合もある[104][105]。

 各大陸や島々における大型動物相の大量絶滅の時期は異なり、「気候変動説」よりも「人類原因説」との合致性がより強く見て取れる[6]。


